Comment les cellules se déplacent-elles ? Jusqu'à présent, les théories sur les détails de ce phénomène étaient contradictoires. Des chercheurs ont désormais étudié les interactions moléculaires complexes impliquées dans le mouvement cellulaire et apportent de nouvelles connaissances sur ce phénomène ainsi que sur d'éventuelles approches thérapeutiques.
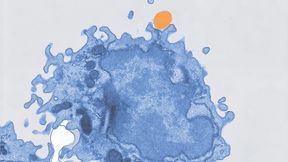
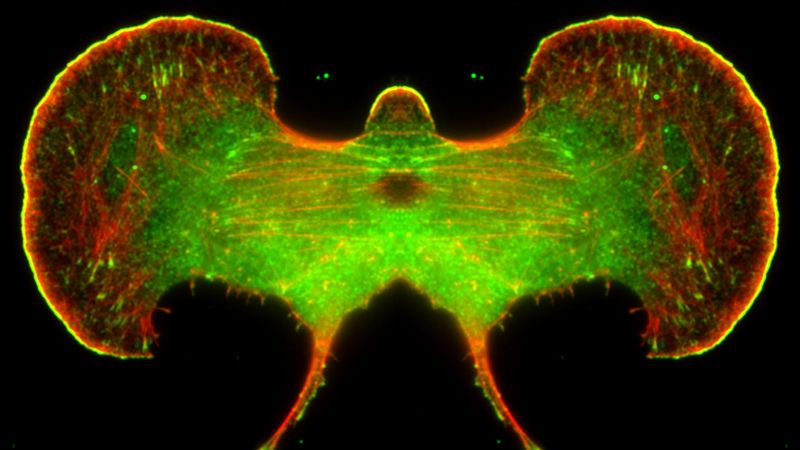
Cellule de mélanome migratrice Profilin1-KO (image inversée) après coloration des filaments d'actine (rouge) et de la polymérase d'actine VASP (vert).
(Image : Dr Yubo Tang)
La capacité des cellules à changer de position joue un rôle essentiel dans de nombreux processus de l'organisme : les cellules immunitaires doivent par exemple atteindre leur site d'action ; lors de la cicatrisation d'une plaie, les cellules migrent vers les tissus lésés ; et des processus similaires jouent également un rôle important dans la croissance des axones, ces longs prolongements des cellules nerveuses. Par ailleurs, les cellules tumorales peuvent tirer parti de leur mobilité pour envahir les tissus environnants et se propager dans l'organisme.
Une équipe du groupe de recherche « Biologie cellulaire moléculaire » du professeur Klemens Rottner, au Centre Helmholtz pour la recherche sur les infections (HZI) vient de mettre en lumière des interactions moléculaires essentielles qui régissent la formation des réseaux d’actine au niveau du front des cellules en migration. Ces découvertes constituent une base importante pour étudier plus en détail à l’avenir comment le mouvement cellulaire évolue également dans le cadre de processus pathologiques et comment il pourrait éventuellement être influencé de manière ciblée.
Les lamellipodes jouent souvent un rôle déterminant dans le déplacement des cellules : il s'agit de prolongements cellulaires plats et larges situés au niveau du bord antérieur des cellules en mouvement. Dans les lamellipodes, la cellule développe à son extrémité avant un réseau dense et ramifié de filaments d'actine. À mesure que ce réseau se développe, il pousse la membrane cellulaire vers l'avant et contribue ainsi au mouvement de la cellule. Mais comment ces lamellipodes sont-ils précisément régulés au niveau moléculaire ? « Jusqu’à présent, les résultats concernant le rôle de la profiline dans cette interaction étaient contradictoires. Nos résultats apportent désormais beaucoup plus de clarté », explique le directeur de l’étude, M. Rottner.
À l'aide de la méthode d'édition génomique CRISPR/Cas9, les chercheurs ont désactivé de manière ciblée des gènes individuels dans des cultures cellulaires – parfois même plusieurs à la fois. Ils ont ensuite étudié comment cela modifiait la structure et le mouvement des lamellipodes, ainsi que la répartition des autres protéines impliquées. Ils ont ainsi pu décrypter étape par étape les relations fonctionnelles entre les différents composants. L’équipe s’est notamment intéressée au rôle des quatre composants suivants :
la protéine profiline (Pfn), qui se lie aux monomères d'actine : la profiline se lie aux monomères d'actine et les maintient sous une forme permettant leur utilisation pour la formation de filaments d'actine en croissance.
le complexe Arp2/3 : Ce complexe protéique déclenche la formation de nouveaux filaments d'actine et génère ainsi les réseaux d'actine ramifiés caractéristiques des lamellipodes.
la protéine de capping hétérodimérique (CP) : Ce complexe, composé de deux sous-unités protéiques, se fixe aux extrémités en croissance rapide des filaments d'actine, les scelle en quelque sorte et limite ainsi la durée pendant laquelle chaque filament peut continuer à croître.
les polymérases de la famille Ena/VASP : Ces protéines favorisent la croissance des filaments d'actine en facilitant l'ajout de nouveaux sous-unités d'actine à leurs extrémités en croissance, à l'instar des formines, une autre classe de polymérases.
« Nous avons réussi à mieux comprendre comment ces composants interagissent entre eux et comment ils régulent ainsi le mouvement », explique le Dr Yubo Tang, premier auteur de l’étude. Cette interaction se manifeste notamment ainsi : la profiline contrebalance l’action des polymérases Ena/VASP, tout en favorisant l’activité du complexe Arp2/3. Ena/VASP et la protéine de capping agissent quant à elles également comme des antagonistes.
Les inactivations géniques combinées se sont révélées particulièrement révélatrices : même en l'absence d'Ena/VASP, l'influence stimulante de la profiline sur le complexe Arp2/3 a été préservée. Il en allait autrement pour la protéine Capping : en l'absence d'Ena/VASP, l'effet que la perte de profiline exerce normalement sur la CP disparaissait. Ces expériences montrent ainsi que la profiline influence à la fois l'Arp2/3 et la CP par des voies différentes.
Interactions réciproques dans le mouvement cellulaire
Dans l'ensemble, ces résultats établissent Profilin comme un régulateur central dans la formation des réseaux d'actine dépendants du complexe Arp2/3. Ces résultats dissipent ainsi les contradictions existantes : des travaux antérieurs avaient suggéré que la profiline orientait les monomères d’actine de manière préférentielle vers des structures dépendantes de la formine ou de l’Ena/VASP, et donc loin de l’Arp2/3 – d’autres travaux étaient en revanche parvenus à la conclusion inverse. « Nous pouvons désormais lever cette incertitude. En effet, nos travaux montrent très clairement que la profiline favorise l’activité de l’Arp2/3 et expliquent également comment », déclare le directeur de l’étude, M. Rottner.
17.09.2026
Il va de soi que nous traitons vos données à caractère personnel de manière responsable. Lorsque nous collectons des données à caractère personnel vous concernant, nous les traitons dans le respect de la réglementation en vigueur en matière de protection des données. Vous trouverez des informations détaillées à ce sujet dans notre politique de confidentialité.
Consentement à l’utilisation des données à des fins publicitaires
J’accepte que la société Vogel Communications Group GmbH & Co. KG, Max-Planckstr. 7-9, 97082 Würzburg, Allemagne, ainsi que toutes les sociétés qui lui sont liées au sens des art. 15 et suivants de la Loi allemande sur les sociétés par actions (AktG) (ci-après dénommées « Vogel Communications Group »), utilise mon adresse e-mail pour m’envoyer des newsletters rédactionnelles. La liste des sociétés concernées peut être consultée ici.
Le contenu de la newsletter porte sur les produits et services de toutes les sociétés susmentionnées, notamment les revues et ouvrages spécialisés, les événements et salons professionnels ainsi que les produits et services liés à ces événements, les offres de médias imprimés et numériques, et des services tels que d’autres newsletters (rédactionnelles), des jeux-concours, des campagnes de prospection, des études de marché en ligne et hors ligne, des portails web spécialisés et des offres d’apprentissage en ligne. Si mon numéro de téléphone personnel a également été collecté, celui-ci peut être utilisé pour me proposer les produits et services susmentionnés des sociétés susmentionnées, ainsi que dans le cadre d’études de marché.
Mon consentement couvre également le traitement de mon adresse e-mail et de mon numéro de téléphone à des fins de rapprochement de données à des fins de marketing avec des partenaires publicitaires sélectionnés, tels que LinkedIn, Google et Meta. À cette fin, Vogel Communications Group est autorisé à transmettre les données mentionnées sous forme hachée à des partenaires publicitaires, qui les utilisent ensuite pour déterminer si je suis également membre des portails de ces partenaires publicitaires. Vogel Communications Group utilise cette fonctionnalité à des fins de reciblage (vente incitative, vente croisée et fidélisation de la clientèle), de génération d’« audiences similaires » pour l’acquisition de nouveaux clients et comme base d’exclusion pour les campagnes publicitaires en cours. Je peux trouver de plus amples informations à ce sujet dans la section « Rapprochement de données à des fins de marketing » de la politique de confidentialité.
Si je consulte sur Internet des contenus protégés sur les portails de Vogel Communications Group, y compris ceux de ses sociétés liées au sens des articles 15 et suivants de la Loi allemande sur les sociétés par actions (AktG), je dois m’inscrire en fournissant des données supplémentaires pour accéder à ces contenus. En contrepartie de cet accès gratuit aux contenus rédactionnels, mes données peuvent être utilisées au sens du présent consentement aux fins mentionnées ici. Cela ne s’applique pas au recoupement des données à des fins de marketing.
Droit de rétractation
Je suis conscient(e) que je peux révoquer ce consentement à tout moment avec effet pour l’avenir. Ma révocation n’affecte pas la licéité du traitement effectué sur la base de mon consentement jusqu’à la révocation. Pour faire valoir ma révocation, je peux notamment utiliser le formulaire de contact disponible à l´adresse https://contact.vogel.de. Si je ne souhaite plus recevoir certaines newsletters auxquelles je suis abonné(e), je peux également cliquer sur le lien de désabonnement figurant à la fin de chaque newsletter. Je trouverai de plus amples informations sur mon droit de rétractation et son exercice, ainsi que sur les conséquences de ma rétractation, dans la politique de confidentialité, à la section « Newsletters rédactionnelles ».
Une modélisation mathématique des données expérimentales, réalisée en collaboration par le professeur Martin Falcke du Centre Max Delbrück de Berlin, a non seulement reproduit les résultats expérimentaux, mais a également suggéré que les protéines Ena/VASP et CP se font concurrence pour des sites de recrutement communs situés à la périphérie des lamellipodes.
Aperçu du mouvement du front cellulaire
Ce travail apporte ainsi des éclairages décisifs sur la logique moléculaire qui régit la formation des réseaux d'actine ramifiés lors de l'avancement de la membrane cellulaire et de la génération de force. « Nous comprenons désormais beaucoup mieux comment les différents éléments moléculaires interagissent au niveau du bord avant d’une cellule », explique Rottner. « Cette compréhension mécanistique constitue une base importante qui permettra à l’avenir d’étudier ce qui se passe différemment lorsque le mouvement cellulaire est altéré de manière pathologique, par exemple dans les cellules cancéreuses ou à la suite d’infections, et à quel niveau ces processus pourront être influencés de manière ciblée à l’avenir. »
Une question importante reste par ailleurs en suspens : quelles sont les structures moléculaires pour lesquelles l'Ena/VASP et la protéine de capping sont en concurrence pour leur recrutement au niveau du front cellulaire ? Il s'agit là d'une des nombreuses pistes de recherche importantes pour les travaux futurs de l'équipe de Rottner.
Publication originale : Yubo Tang, Matthias Schaks, Xinqi Jiang, Marius Karger, Magdalena Mietkowska, Julian Kaltenhäuser, Jonas Scholz, Ruth Benavente-Naranjo, Sijian Hu, Sarah Körber, Zhilun Li, Christopher Lambert, Jessica L. Henty-Ridilla, Theresia E. B. Stradal, Roger Karlsson, Peter Bieling, Jan Faix, Martin Falcke & Klemens Rottner : La profiline favorise la protrusion des lamellipodes en régulant les activités antagonistes de la protéine de coiffage et de la VASP, Nature Communications, volume 17, numéro d'article : 9887 (2026) DOI : 10.1038/s41467-026-77694-8